Instagram

La evolución de la polilla moteada durante la Revolución Industrial
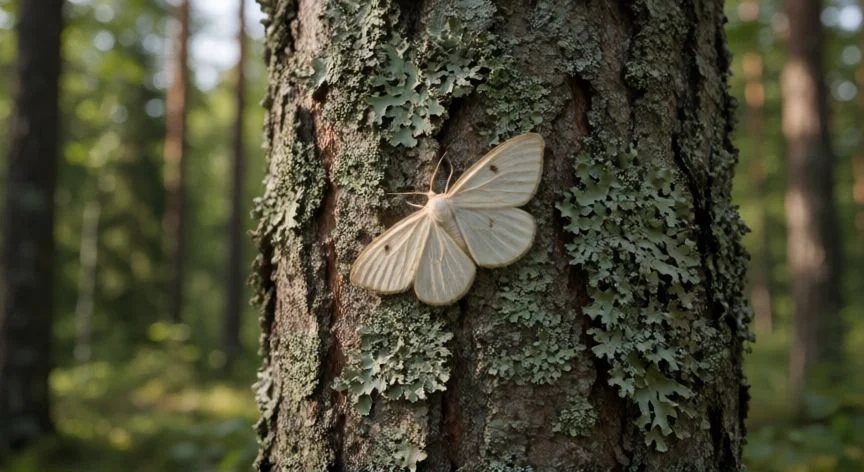
Antes de que las fábricas de Inglaterra empezaran a escupir humo y hollín sobre los campos, la polilla moteada (Biston betularia) vivía casi exclusivamente como la forma clara, conocida como variedad typica, con sus alas moteadas en blanco y negro que se fundían con la corteza de los abedules y los líquenes pálidos que cubrían los troncos. La frecuencia del alelo oscuro rondaba apenas el 0,01%. Era una polilla de actividad nocturna, y pasar desapercibida durante el día resultaba clave para no acabar en el pico de un carbonero común. La forma oscura, la carbonaria, simplemente no existía en registros conocidos antes de 1811; el primer espécimen conservado, de origen incierto, data de ese año y se guarda en la Universidad de Oxford.
El primer ejemplar vivo lo capturó R. S. Edleston en Mánchester en 1848, aunque no lo publicó hasta dieciséis años después, en la revista Entomologist de 1864. Para entonces, Edleston ya señalaba que la forma oscura era el tipo más común de polilla en su propio jardín. El cambio se había acelerado con una velocidad asombrosa.
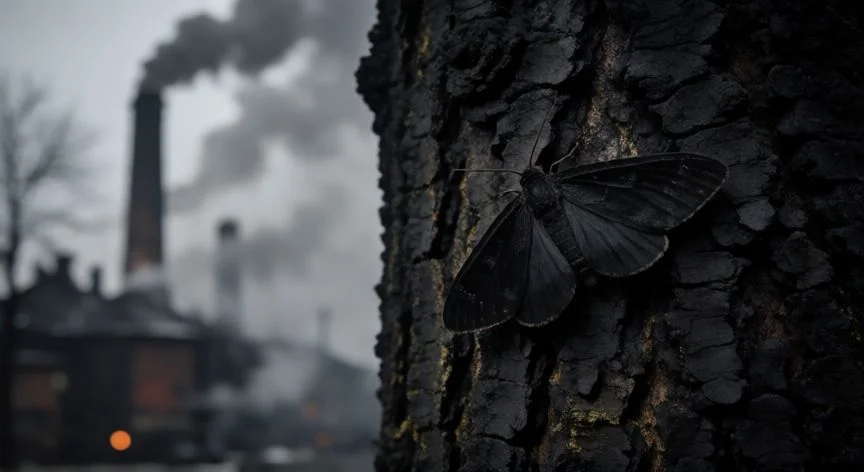
¿Qué provocó ese giro tan dramático? Las primeras décadas de la Revolución Industrial cubrieron los campos entre Londres y Mánchester con hollín de las fábricas que quemaban hulla. Las emisiones de dióxido de azufre mataron a los líquenes de color claro, y los árboles se volvieron oscuros. De pronto, las polillas claras, que antes eran crípticas sobre la corteza pálida, contrastaban drásticamente con el entorno ennegrecido. Las aves las veían con facilidad y las depredaban con mayor frecuencia. Las polillas oscuras, en cambio, se camuflaban muy bien sobre los troncos cubiertos de hollín. El camuflaje se invirtió por completo.
El término que acuñó este fenómeno fue melanismo industrial. Sewall Wright lo describió como "el caso más claro en donde un proceso evolutivo conspicuo ha sido observado", y hoy se considera el primer caso registrado de la selección natural de Darwin funcionando en tiempo real. Para mediados del siglo XIX la presencia de polillas oscuras ya había crecido de manera notable, y los números que siguen hablan por sí solos:
| Periodo | Frecuencia de forma oscura | Contexto |
|---|---|---|
| Pre-industrialización | ~0,01% | Líquenes claros, corteza clara |
| 1848 (Mánchester) | ~2% | Primeras emisiones industriales |
| 1864 (Edleston) | Forma oscura ya dominante en su jardín | Contaminación creciente |
| 1895 (Mánchester) | 98% | Bosques ennegrecidos por hollín |
| 1898 (Britannica) | 99 a 1 (oscura/clara) | Máximo del melanismo industrial |
La explicación es directa: las polillas oscuras, que originalmente eran mutaciones al azar, eran muy visibles para los depredadores cuando descansaban sobre árboles cubiertos de líquenes claros. Con la contaminación, el hollín cubrió los árboles y mató los líquenes, haciendo que la forma oscura pasara a ser la menos conspicua para las aves. Lo que antes era una desventaja se convirtió en la ventaja definitiva.
La implicación para la teoría de Darwin no tardó en percibirse. En 1878, el entomólogo Albert Brydges Farn le escribió a Darwin para discutir sus observaciones sobre variaciones de color en la polilla Gnophos obscurata: oscura en turberas de New Forest, marrón en arcilla de Herefordshire, blanca en acantilados calizos de Lewes. Una variación que sugería, con claridad meridiana, la supervivencia del más apto.
La formulación científica formal llegó en 1896, catorce años después de la muerte de Darwin. James William Tutt vinculó explícitamente el melanismo a la selección natural y propuso la hipótesis de depredación selectiva de aves: la forma melánica se camuflaba mejor en corteza sin líquenes, la forma typica en corteza con líquenes, y las aves comían con mayor frecuencia a los morfos no camuflados. Tutt había descartado previamente factores como humedad, temperatura, herencia o enfermedad, y centró su explicación en la cripsis en un ambiente cambiante.
En 1924, J. B. S. Haldane calculó la ventaja selectiva necesaria para explicar el registro evolutivo, partiendo del 2% de formas oscuras en 1848 y el 95% en 1895. La forma melánica debía haber sido alrededor de un 50% más apta que la clara, con cálculos que sugirieron ventajas de hasta el 30%. Los cambios fueron demasiado rápidos para la deriva genética. Haldane demostró así que los modelos matemáticos combinando selección natural y genética mendeliana explicaban la evolución, un papel clave en la fundación de la genética de poblaciones y de la síntesis evolutiva moderna.
Genéticamente, el alelo oscuro es dominante y el claro es recesivo. Las polillas typica solo muestran su fenotipo en homocigotos, nunca en heterocigotos. Los melánicos están determinados por una serie de alelos dominantes en un solo locus, y el fenotipo se hereda como autosómico dominante. Hibridaciones cruzadas muestran que el fenotipo inglés (carbonaria) y el norteamericano (swettaria) son producidos por isoalelos en un solo locus, un modelo de evolución paralela fascinante.
La investigación molecular reveló que el alelo melánico carbonaria tuvo un origen único en Gran Bretaña, surgido alrededor de 1819. El locus es ortólogo de un locus mayor de patrón alar en mariposas del género Heliconius. Steward dedujo, a partir de los primeros registros por localidad, que la forma carbonaria fue el resultado de una única mutación que luego se propagó. El melanismo ha aparecido en poblaciones de Europa y Norteamérica, pero no se ha encontrado en Japón, donde las polillas moteadas no habitan regiones industrializadas.
“Con la legislación anticontaminación, carbonaria cayó del 90% al 20% entre 1970 y 1995 en Wirral (Liverpool), cerrando el ciclo evolutivo.”
Dato clave