Instagram

Fisiopatología del COVID-19: cómo el SARS-CoV-2 descontrola el organismo
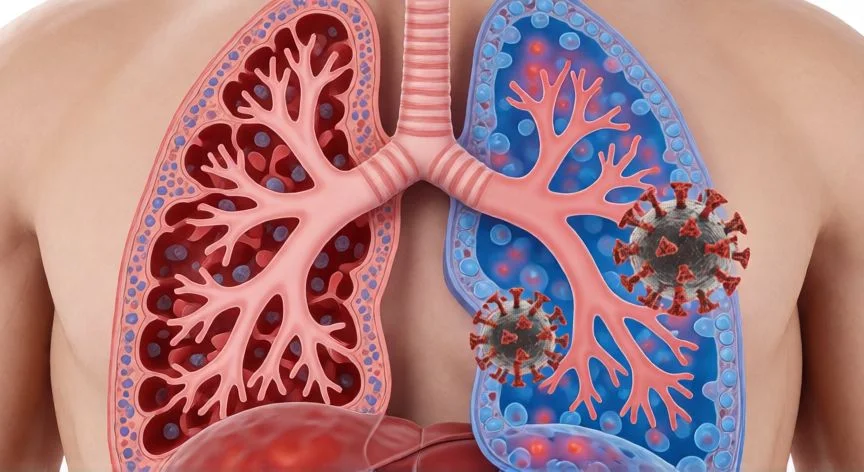
La fisiopatología del COVID-19 es, hoy por hoy, uno de los campos más complejos de la medicina moderna. No hablamos de una enfermedad lineal con un solo mecanismo, sino de un espectro clínico extraordinariamente amplio que va desde la infección completamente asintomática hasta el fallo multiorgánico fatal. Los datos epidemiológicos globales pintan un panorama claro: aproximadamente el 81% de los casos confirmados son leves, un 14% progresa a neumonía severa, y ese 5% restante termina en SDRA, sepsis o fallo multiorgánico. Esa heterogeneidad es, precisamente, la gran pregunta que la investigación trata de resolver.
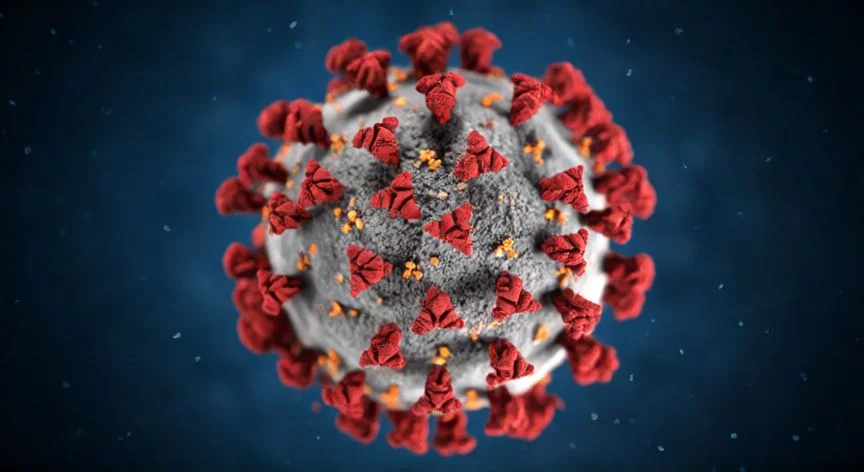
El agente causal, el SARS-CoV-2, es un betacoronavirus envuelto con RNA de cadena simple y sentido positivo, de unos 30 kb de longitud. Comparte un 79% de similitud de secuencia con el SARS-CoV original de 2002-2003, pero ha desarrollado diferencias estructurales que resultan determinantes para su patogenicidad. El virión se organiza en cuatro proteínas estructurales principales:
- Proteína Spike (S): responsable de la unión y entrada en la célula huésped.
- Proteína de membrana (M): clave para el ensamblaje viral.
- Proteína de envoltura (E):参与 la liberación de partículas virales.
- Proteína de nucleocápside (N): empaqueta el genoma de RNA.
Las tres últimas son críticas para el ensamblaje y la salida del virus, mientras que la proteína S es la llave que abre la puerta a la infección. Y aquí empieza lo interesante.
La entrada en la célula huésped arranca cuando la subunidad S1 de la proteína spike se une al receptor ACE2 (enzima convertidora de angiotensina 2). Este receptor no está confinado al pulmón, muy al contrario. Se expresa en:
- Células epiteliales ciliadas nasales
- Células alveolares tipo 2
- Células endoteliales
- Intestino delgado
- Riñones, corazón, tiroides, testículos y tejido adiposo
Esa distribución tan amplia del ACE2 es la razón por la que el virus puede infectar directamente células de otros sistemas orgánicos cuando hay viremia. No es solo un virus respiratorio, es un virus multiorgánico en potencia.
Un detalle molecular que marca un antes y un después es el sitio de escisión furina-like en la proteína S, entre las subunidades S1 y S2. Se trata de una inserción de cuatro aminoácidos ausente en todos los demás coronavirus conocidos. Esta adaptación permite que proteasas furina-like, expresadas de forma ubicua en múltiples tejidos humanos, activen la spike del virus en una gama de células mucho más amplia que otros coronavirus. Es mimetismo molecular puro: el virus explota la maquinaria del huésped con una eficiencia extraordinaria.
Tras la unión al ACE2, la proteasa transmembrana TMPRSS2 escinde la proteína spike en el sitio S2', activando la subunidad S2 para la fusión de las bicapas lipídicas viral y celular. El genoma de RNA entra así en el citoplasma. Existe una vía alternativa vía endosomas con catepsinas B/L, aunque no es la ruta eficiente en células epiteliales primarias.
Una vez dentro, el RNA viral inicia la producción directa de proteínas virales, incluidas las proteínas de la replicasa que forman fábricas de replicación a partir de membranas del retículo endoplásmico. Estas fábricas crean vesículas de doble membrana que protegen los intermediarios de transcripción de RNA de doble cadena de la detección por receptores de reconocimiento de patrones citoplasmáticos. El principal detector es MDA5, que reconoce esos RNAs largos e inicia la cascada de interferones tipo I y tipo III.
“Niveles de IL-6 sérica >80 pg/ml al ingreso son predictor independiente de mortalidad por COVID-19 severo.”
Dato clave