Instagram

Cómo se fabrica la dopamina en el cuerpo: una guía bioquímica completa
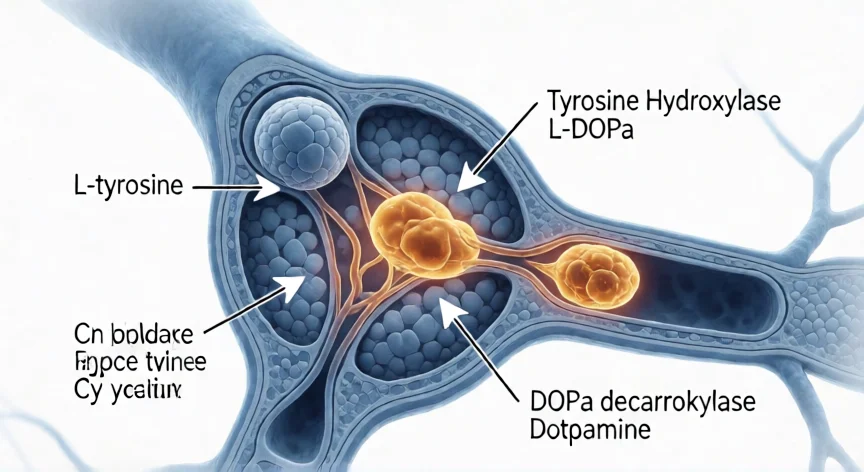
La dopamina, cuya fórmula es C8H11NO2 y cuyo nombre IUPAC es 4-(2-aminoetil)benceno-1,2-diol, es una feniletilamina del grupo de las catecolaminas. Funciona como neurotransmisor en el sistema nervioso central y también como neurohormona hipotalámica. Lo primero que conviene entender es que su fabricación no es un chispazo puntual, sino una secuencia bioquímica con dos reacciones encadenadas. Se produce tanto en neuronas del encéfalo como en la médula suprarrenal, y dentro de las neuronas el ensamblaje ocurre en los terminales axónicos, donde las enzimas viajeras van y vienen por el propio axón.
El punto de partida siempre es la L-tirosina, un aminoácido que las neuronas captan desde la sangre. Esa tirosina puede venir de dos sitios: de las proteínas que comemos (carne de ave, huevo, lácteos, soja, pescado) o de la producción hepática a partir de la fenilalanina. Aquí hay que prestar atención porque la ruta tiene un escalón previo antes de los dos pasos clásicos: la enzima fenilalanina hidroxilasa transforma fenilalanina en tirosina, así que si comes frutos secos, legumbres o lácteos ricos en fenilalanina, tu hígado está fabricando el combustible de partida.
El primer paso y el decisivo es la hidroxilación: la tirosina se convierte en L-DOPA (L-3,4-dihidroxifenilalanina). Quién lo hace es la tirosina 3-monooxigenasa, conocida casi siempre por su apodo corto: tirosina hidroxilasa (TH o TyrH). Esta enzima coloca un grupo hidroxilo en el anillo aromático del aminoácido. Es la reacción más lenta de toda la cadena, y por eso se la llama paso limitante de la velocidad. Todo lo que viene después va al ritmo que marque este primer escalón.
La tirosina hidroxilasa pertenece a la familia de las hidroxilasas de aminoácido aromático, junto con la fenilalanina hidroxilasa y la triptófano hidroxilasa. Las tres comparten una química calcada: usan dioxígeno molecular (O2) y biopterina reducida en una reacción que se sostiene sobre un átomo de hierro en el centro activo. Ese hierro está anclado por dos residuos de histidina y uno de glutamato, y tiene que estar en estado ferroso (Fe2+) para que haya catálisis. Los centros activos de TH y fenilalanina hidroxilasa son prácticamente superponibles.
La regulación de la tirosina hidroxilasa es el verdadero centro de control de toda la fábrica. La enzima tiene una estructura multi-dominio:
| Dominio | Tamaño | Función |
|---|---|---|
| Amino-terminal regulador (R) | 100-150 residuos | Controla el acceso al sitio catalítico; los residuos 19 a 33 cruzan la abertura |
| Catalítico (C) | ~330 residuos | Alberga el hierro y el sustrato; realiza la reacción |
| Carboxilo terminal | ~20 unidades en espiral enrollada | Estructura de soporte |
Las tres hidroxilasas forman tetrámeros, y el dominio R se sitúa sobre la abertura del centro activo como una tapa que restringe el acceso. La TH humana presenta cuatro isozimas que difieren en el dominio regulador: el isozima 1 es muy similar al de rata (93 % de similitud, 89 % de identidad), mientras que los isozimas 2, 3 y 4 incorporan aminoácidos adicionales tras la metionina 30 por empalme alternativo del ARN. Esos extras caen justo en la región donde ocurre la fosforilación, lo que añade un nivel extra de complejidad estructural.
La TH se fosforila en residuos de serina del dominio R. A diferencia de sus hermanas de familia, que solo tienen una serina fosforilable, la tirosina hidroxilasa presenta cuatro: ser8, ser19, ser31 y ser40 en la enzima de rata (la posición 8 es una treonina en humanos). Sobre ella actúan un ejército de quinasas: PKA, PKC, CaMKII, MAPKAP-K2, ERK1, ERK2, MSK1, Cdk5 y PRAK. La fosforilación por PKA en ser40 produce una activación de hasta 20 veces, una caída de 2 veces en la KM para tetrahidrobiopterina y, sobre todo, una disminución de unas 300 veces en la afinidad por las catecolaminas, lo que libera a la enzima de su propia inhibición por retroalimentación.
Esa inhibición por retroalimentación es un mecanismo central: la dopamina se une a la TH compitiendo con la tetrahidrobiopterina e interactuando con el dominio R. Cuando los niveles de dopamina suben, la actividad de la TH cae; cuando bajan, la TH se reactiva. La reversión la ejecutan las fosfatasas PP2A y, en menor medida, PP2C, retirando los fosfatos de las serinas 19, 31 y 40. La fosforilación en ser31 por ERK1/2 y Cdk5 reduce a la mitad la KM para BH4, mientras que la ser19 no altera por sí sola los valores cinéticos pero sí estabiliza levemente la enzima frente a la desnaturalización térmica.
Existe una jerarquía en la fosforilación: CaMKII fosforila la ser40 dos o tres veces más rápido si la ser19 ya está fosforilada. Esa fosforilación previa en ser19 permite el reclutamiento de las proteínas 14-3-3, una familia de andamios que se unen a proteínas fosforiladas y las activan o estabilizan; la TH y el triptófano hidroxilasa fueron de las primeras enzimas descubiertas como activadas por las 14-3-3. También se han descrito interacciones con alfa-sinucleína, que mediana el estado oxidativo de la neurona, y con el propio transportador vesicular.
La TH sufre además modificaciones químicas ligadas al redox neuronal. En presencia de óxido nítrico se producen nitración de tirosinas y glutatiónilación de cisteínas de la enzima, una capa de regulación que conecta la síntesis de dopamina con el estrés oxidativo. El mismo factor que daña la tetrahidrobiopterina daña la enzima que la utiliza.
“Cerca del 50 % de la dopamina total del cuerpo se fabrica en el intestino, pero casi ninguna cruza la barrera hematoencefálica: cerebro y tripa son economías aisladas.”
Dato clave